Deriva genética: mecanismo, efecto fundador y ejemplos
Comprende la deriva genética con un ejemplo de frecuencias alélicas. Distingue azar, tamaño efectivo, efecto fundador, cuello de botella y selección.
En pocas palabras
- La deriva cambia frecuencias alélicas por muestreo aleatorio.
- Sus efectos dependen del tamaño efectivo y la historia demográfica.
- Una diferencia genética no demuestra por sí sola selección ni deriva.
En este artículo
La deriva genética es el cambio aleatorio de las frecuencias alélicas entre generaciones debido al muestreo finito de la reproducción y la supervivencia. Puede hacer que un alelo aumente, disminuya, se pierda o llegue a fijarse sin que ese cambio se deba a una ventaja adaptativa. Sus efectos suelen ser más intensos cuando el tamaño efectivo de la población es pequeño.
La pregunta central no es cuántas variantes existen, sino por qué cambia su frecuencia. La diversidad genética describe un estado o una propiedad de la población; la deriva describe un proceso evolutivo que puede modificarla. Distinguir ambas cosas permite interpretar ejemplos de efecto fundador y cuello de botella.
Por qué el azar puede cambiar una frecuencia
Un alelo es una versión de una secuencia genética en un locus. Su frecuencia expresa la proporción de copias de esa variante entre las copias consideradas. En una población diploide de N individuos, un locus autosómico tiene 2N copias, siempre que todos los individuos cuenten con ambas y formen parte de la población definida.
La reproducción no garantiza que cada alelo contribuya exactamente en su proporción inicial a la generación siguiente. Algunos individuos dejan más descendientes por circunstancias aleatorias, y la transmisión de copias también implica muestreo. El NHGRI define la deriva como fluctuaciones aleatorias de frecuencias alélicas.
Azar no significa ausencia de causas físicas ni que cualquier desenlace tenga la misma probabilidad. Significa que, en el modelo, la contribución diferencial no se explica por una ventaja del alelo analizado. Aun con reglas definidas de reproducción, el resultado concreto puede variar entre poblaciones inicialmente equivalentes.
Una variante frecuente tiene, en un modelo neutral simple, más posibilidades de terminar fijada que una rara. Pero su frecuencia alta no obliga a que aumente en la generación inmediata. La deriva describe probabilidades y trayectorias variables, no una flecha inevitable hacia el alelo más común.
Ejemplo resuelto: de veinte copias a una generación nueva
Imagine una población didáctica de diez individuos diploides, con un locus autosómico y dos alelos, A y a. Hay diez copias A y diez copias a: p(A) = 10/20 = 0.50. Suponemos generaciones discretas y reproducción sin diferencias de aptitud asociadas con este locus.
Para representar una generación nueva, se sortean veinte copias con probabilidad inicial de 0.50 para cada alelo. Suponga que el resultado es 13 copias A y siete a. La nueva frecuencia es p(A) = 13/20 = 0.65. El cambio es 0.65 − 0.50 = 0.15, es decir, 15 puntos porcentuales.
El resultado no demuestra que A sea mejor. En otra repetición del mismo modelo podrían obtenerse ocho copias A y doce a: p(A) = 0.40. Comparar repeticiones muestra que la variación aparece por el muestreo, incluso cuando las condiciones iniciales y las reglas son iguales.
Tamaño efectivo y pérdida de variación
El tamaño efectivo, Ne, representa el tamaño de una población ideal que experimentaría una intensidad equivalente del proceso genético considerado. No es necesariamente igual al número de individuos censados. La desigualdad reproductiva, la proporción de sexos y la historia demográfica pueden modificar la relación.
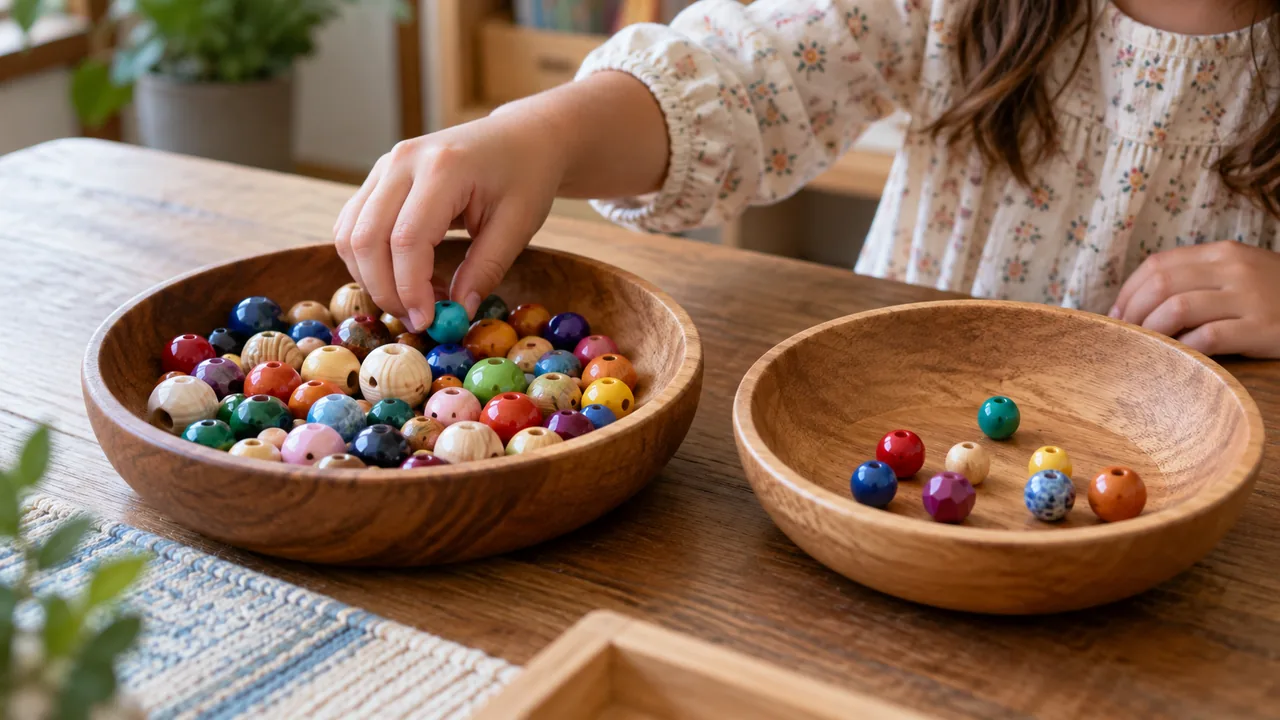
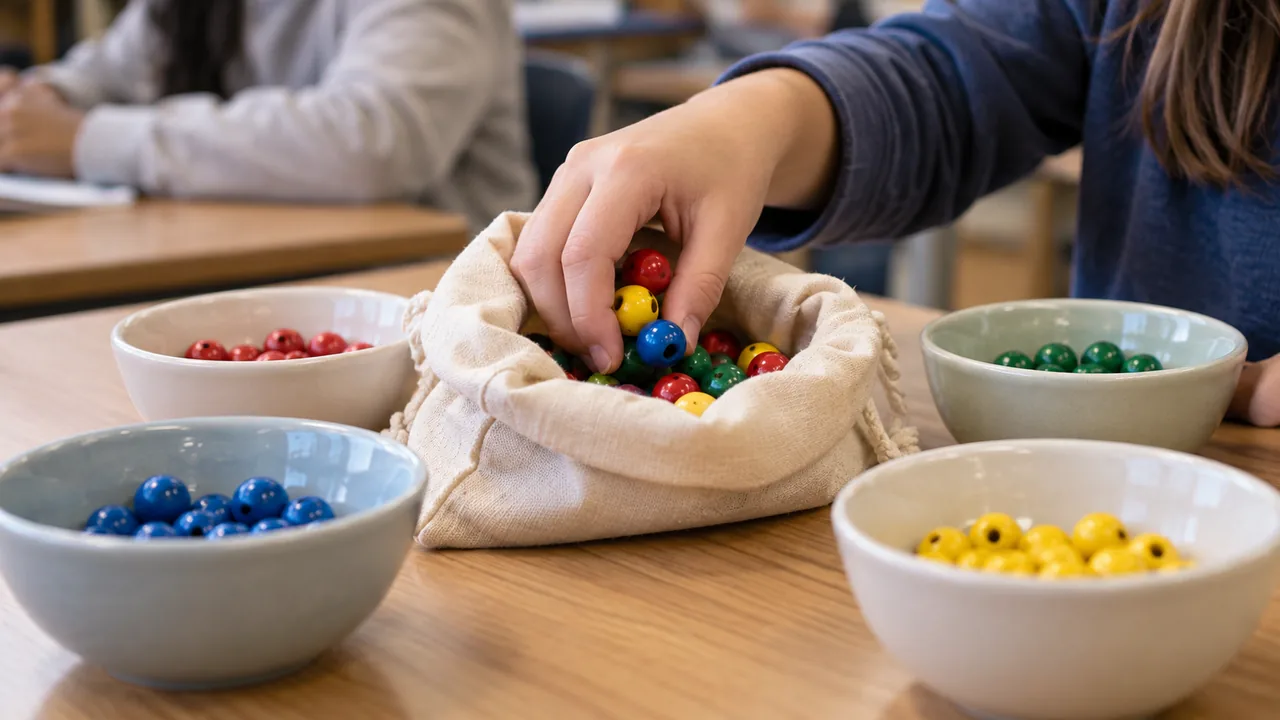
En poblaciones con pocas contribuciones reproductivas, la descendencia constituye una muestra menos representativa de las variantes previas. Es parecido a observar gran variación entre pequeñas muestras de fichas: la analogía ayuda a entender el muestreo, aunque una población real posee parentesco, estructura espacial y generaciones que pueden superponerse.
La genética de poblaciones de OpenStax sitúa la deriva junto a otros mecanismos evolutivos. En un modelo neutral cerrado, la deriva tiende a reducir la variación dentro de una población a lo largo del tiempo, mientras poblaciones aisladas pueden divergir entre sí.
No tiene que disminuir cualquier indicador en todas las generaciones. Dos frecuencias pueden acercarse temporalmente y aumentar una medida de heterocigosidad, aunque la tendencia esperada a largo plazo bajo el modelo sea de pérdida. El artículo sobre diversidad genética explica qué mide cada indicador.
Efecto fundador y cuello de botella
El efecto fundador ocurre cuando pocos individuos establecen una población nueva y llevan una muestra de las variantes de origen. Esa muestra puede tener frecuencias distintas y carecer de alelos presentes en la población inicial. La diferencia no exige que el nuevo ambiente favorezca inmediatamente una variante.
Un cuello de botella es una reducción demográfica durante la historia de una población. La muestra de sobrevivientes y, especialmente, de quienes dejan descendencia puede conservar solo una parte de la variación previa. El Museo de Paleontología de la Universidad de California en Berkeley distingue ambos escenarios.
Suponga que una población fuente tiene un alelo raro en el 5% de sus copias. Si un grupo pequeño funda otra población sin llevarlo, ese alelo empieza ausente allí. El crecimiento posterior de la población no lo recupera automáticamente: haría falta alguna fuente que lo introdujera o generara de nuevo.
Una reducción de individuos no prueba que todo el cambio genético sea neutral. La mortalidad puede asociarse a características heredables, y entonces también participa la selección. Efecto fundador y cuello de botella describen contextos demográficos; para atribuir un patrón concreto, deben evaluarse mecanismos alternativos.
| Proceso | Cambio central | ¿Necesita ventaja adaptativa? |
|---|---|---|
| Deriva | Muestreo aleatorio de copias | No |
| Selección natural | Éxito reproductivo asociado con variación heredable | Implica diferencias de aptitud |
| Flujo génico | Ingreso o salida de variantes por reproducción entre poblaciones | No |
| Mutación | Origen de nuevas variantes por cambios de secuencia | No |
- Proceso
- Deriva
- Cambio central
- Muestreo aleatorio de copias
- ¿Necesita ventaja adaptativa?
- No
- Proceso
- Selección natural
- Cambio central
- Éxito reproductivo asociado con variación heredable
- ¿Necesita ventaja adaptativa?
- Implica diferencias de aptitud
- Proceso
- Flujo génico
- Cambio central
- Ingreso o salida de variantes por reproducción entre poblaciones
- ¿Necesita ventaja adaptativa?
- No
- Proceso
- Mutación
- Cambio central
- Origen de nuevas variantes por cambios de secuencia
- ¿Necesita ventaja adaptativa?
- No
Deriva, selección, mutación y flujo génico
La selección natural relaciona variantes heredables con diferencias de éxito reproductivo en un ambiente. La deriva no necesita esa relación. Sin embargo, ambos procesos pueden actuar sobre el mismo locus. Un alelo beneficioso puede perderse cuando es raro, y uno desfavorable puede aumentar por azar bajo determinadas condiciones.
La mutación crea variantes de secuencia; la deriva cambia la representación de variantes en la población. El flujo génico puede introducir copias desde otra población. Ninguno debe usarse como sinónimo del otro. La recombinación, por su parte, reorganiza asociaciones y no explica por sí sola todo origen de alelos.
La manipulación genética describe intervenciones técnicas sobre material genético, una categoría distinta de estos mecanismos de cambio poblacional. Una modificación puede después propagarse o desaparecer por procesos evolutivos, pero intervención y destino poblacional son preguntas separadas.
Cómo leer un resultado sin atribuirlo todo al azar
Una diferencia de frecuencias entre dos muestras puede reflejar deriva, selección, migración o error de muestreo del estudio. Es necesario conocer tamaño de muestra, marcadores, parentesco, historia y delimitación de las poblaciones. Muestrear pocos organismos puede producir incertidumbre aun si la población biológica es grande.
Slatkin y Excoffier estudiaron mediante modelos y simulaciones cómo eventos fundadores sucesivos durante expansiones pueden generar patrones espaciales. Su artículo en Genetics muestra que una expansión puede producir cambios importantes sin que cada gradiente geográfico pruebe adaptación.
Una conclusión académica debe especificar qué modelo se comparó con los datos y qué alternativas siguen abiertas. La deriva es una explicación comprobable dentro de un marco probabilístico; no es una etiqueta para todo patrón cuya causa todavía se desconoce.
Referencias
- NHGRI. Genetic Drift. https://www.genome.gov/genetics-glossary/Genetic-Drift
- OpenStax. Biology 2e: Population Genetics. https://openstax.org/books/biology-2e/pages/19-2-population-genetics
- University of California Museum of Paleontology. Bottlenecks and founder effects. https://evolution.berkeley.edu/bottlenecks-and-founder-effects/
- Slatkin, M.; Excoffier, L. Serial Founder Effects During Range Expansion: A Spatial Analog of Genetic Drift. Genetics, 2012. https://pmc.ncbi.nlm.nih.gov/articles/PMC3338258/
Autoría
Study Mais
Sigue estudiando
Diversidad genética: indicadores y ejemplo resuelto
Comprende la diversidad genética, las frecuencias alélicas y la heterocigosidad con un ejemplo resuelto y criterios para interpretar estudios de poblaciones.
Ecosistema terrestre: tipos, factores y funcionamiento
Comprende el ecosistema terrestre y compara bosque, selva, matorral y pastizal. Relaciona suelo, clima y redes tróficas con un ejemplo de hojarasca.
Célula vegetal: partes, organelos y funciones explicadas
Conoce las partes de la célula vegetal y sus funciones. Relaciona pared, vacuola y plastos con ejemplos de raíz y hoja y criterios de observación.